Mostrando entradas con la etiqueta Hominización. Mostrar todas las entradas

miércoles, 19 de diciembre de 2012

Chimpancés.

Los chimpancés son dos especies hermanas del Homo sapiens que divergieron entre sí hace 1,5 Ma, cuando se originó el río Congo y quedaron separadas las poblaciones del norte, que dieron lugar a los chimpancés, de las del sur que evolucionaron hasta los actuales bonobos. Su hábitat se ha mantenido prácticamente inalterado. Chimpancé proviene del bantú kimpanzi o chimpanzi. Pan es el nombre que se ha asignado al género. El dios Pan era el único del Panteón griego a la vez hombre y animal.
Nuestro conocimiento de los chimpancés proviene de tres estudios de campo de larga duración:

  1. Jane Goodall y colaboradores en el Parque Nacional de Gombe Stream, Tanzania.
  2. Toshisada Nishida, Yukimaru Sugiyama y colegas en las cercanías montañosas de Mahale.
  3. Christophe y Hedwige Boesch en el Taï Forest, Costa de Marfil.


TAXONOMÍA DEL GÉNERO Pan
  • Pan paniscus Schwarz, 1929. Bonobo o chimpancé pigmeo. Selvas húmedas al sur del Río Congo y norte del Río Kasai en África Central. A pesar de su nombre, no son de menor tamaño que los chimpancés comunes. Rostro negro y labios internos muy rojos, cabello largo que parece peinado con raya al medio y llega a cubrirles las orejas, piernas largas, tronco más largo, brazos más cortos, capacidad de agarre de precisión con el pulgar y el índice de los pies y, de modo muy notable, los genitales de las hembras están rotados hacia adelante, algo que también ocurrió en nuestra propia especie de modo independiente, y que favorece la cópula cara a cara. La intensa sexualidad parece ser uno de los elementos clave de su sociedad. Al no saberse de qué macho puede ser una cría, eliminan la lucha por la supervivencia de los genes propios frente a los de otros machos competidores (causa principal del infanticidio), más crías sobreviven y todo el grupo cuida a todas las crías y a los genes de todos, lo que sin duda tiene una ventaja evolutiva. Tiende a una dominancia de las hembras que establecen estrechos lazos emocionales entre sí, en hermandades sólidas que conducen al grupo. Además, los inevitables enfrentamientos en el interior del grupo suelen resolverse mediante un intercambio sexual, sin importar si ambos contendientes pertenecen o no al mismo sexo, ni su edad, siendo sexualmente maduros. Tal intercambio puede implicar únicamente el frotamiento de genitales entre sí de diversas y creativas formas, el masaje manual de los genitales del otro, incluir ardientes besos o llegar a las cópulas frontales o traseras.


  • Pan troglodytes. Chimpancé común. Menos arborícola que el anterior.
    • Pan troglodytes troglodytes. Blumenbach, 1775. Chimpancé Central.
    • Pan troglodytes vellerosus (Pan troglodytes ellioti) Gray, 1862. Chimpancé de Nigeria.
    • Pan troglodytes  schweinfurthii. Giglioli, 1862. Chimpancé Oriental. Salvo insectos, consume pocos alimentos de origen animal. Machos y hembras tienen tendencia a desplazarse de forma individual para recolectar frutos e insectos, pero se reagrupan por razones sociales o cuando la abundancia de alimentos lo permite.
    • Pan troglodytes verus. Schwarz, 1934. Chimpancé Occidental. Se duda si deberían ser clasificados como una especie independiente, debido a que su comportamiento es diferente del resto de los troglodytes, una divergencia que comenzó hace 500 ka: Viven en entornos en mosaico, usan cuevas y lugares para la socialización y el descanso, predicen el movimiento del fuego, construyen trampas para cazar a otros primates, comparten comida a base de plantas, consumen termitas de forma desproporcionada, son nocturnos y se sumergen y juegan en el agua. Además, no se ha conseguido su habituación a los humanos.
Los chimpancés viven en pandillas de 25-100 individuos genéticamente emparentados, que se fusionan o fisionan según las necesidades. Muestran un elevado grado de cooperación y socialización. Practican el despiojamiento con una función apaciguadoras además de higiénica, Los machos colaboran mutuamente en general, quizá por que a ninguno de ellos se le niega el acceso a las hembras. Éstas pueden ser montadas por varios machos, genéticamente emparentados, de forma consecutiva. Se produce pues competición espermática. De todas formas, las hembras prefieren copular con los machos de alto rango, con aquellos con los que tienen una relación especial y con los machos recién llegados, protegiendo así a las crías del infanticidio.
La variabilidad genética se establece mediante la exogamia de algunas hembras. Los machos se quedan en su grupo natal toda la vida. Si un grupo de machos se topa con un grupo menor mata a los machos y a las crías e incorpora a las hembras a su grupo.
El cuidado de las crías corre a cargo de las hembras. Los machos defienden el territorio mediante patrullas bien organizadas-


      El dimorfismo sexual se manifiesta de forma más acusada en el tamaño de los caninos.
      Son vegetarianos aunque a veces completan su dieta con insectos o pequeños vertebrados.
      Practican el knuckle walking.
      los chimpancés comunes resuelven los conflictos sexuales mediante el poder; los bonobos resuelven los conflictos de poder mediante el sexo. 

      Tanto bonobo como chimpancé común, pueden utilizar herramientas, aprender el lenguaje de signos de los sordomudos, cazar y comer a otros animales (incluidos otros primates). La diferencia más notable es que los bonobos exhiben menos agresiones entre los miembros del grupo, cometen infanticidio y canibalismo de modo menos frecuente y no se les ha visto emprender guerras contra otros grupos. El chimpancé común, más abundante, comparte hábitat con los gorilas y debe luchar por sus alimentos, mientras que el bonobo tuvo la suerte de no contar con competidores relevantes en la zona en que se desarrolla.

      Pan troglodytes verus y Pan togldytes vellerosus practican la técnica del percutor-yunque: utilizan una piedra o una madera para abrir frutos apoyados en una superficie dura. Se establece una coordinación sobre tres objetos, lo que requiere un considerable control motor y una importante habilidad cognitiva, indicando la presencia de una representación simbólica de los objetos empleados como instrumentos, anticipación y planificación (Sugiyama, 1997. Byrne, 1995). La mayor eficiencia se da en las hembras adultas. Esta habilidad no es innata, sino que requiere un largo aprendizaje, que corre a cargo de las madres.
      En Gombe, los chimpancés apiñan hojas en sus bocas y después sumergen estas "esponjas" en hendiduras para absorber el agua.

      Tras la caza, el reparto de los despojos se acompaña de tranquilas interacciones sociales. En el reparto interviene todo el grupo, incluyendo los individuos que no participaron en la caza. Ningún macho dominante intenta robar la presa (En Taï Forest sí se da este tipo de robo). Todos suplican una parte del botín mediante pequeñas vocalizaciones, toques prudentes o una mano tendida con la palma hacia arriba. El cazador cede pequeñas partes y tolera algunos hurtos. Los machos que ayudaron en la caza apartan los mejores trozos. Las hembras dominantes y las que están en celo, obtienen con facilidad su parte. Los machos jóvenes, el resto de las hembras y las crías, se contentan con algunos restos. A veces, las sesiones de reparto duran horas.
      Los chimpancés de Tanzania machacan los trozos de carne con hojas, los de Gabón, con raspaduras de corteza. De esta forma, al endurecer la mezcla, se prolonga el placer gustativo. En el caso de los sesos, introducen la bolita de hojas en la cavidad craneal para sacar la sustancia.

      COMPORTAMIENTOS CULTURALES OBSERVADOS EN CHIMPANCÉS
      Estos comportamientos se practican con distinta intensidad (alguno de ellos está ausente) en las distintas comunidades en las que se han observado.

      1. Para abrir las nueces de Coula los chimpancés utilizan piedras como martillos y yunques.
      2. Cavan y practican agujeros en los árboles con tallos de palmera.
      3. Introducen ramitas en los nidos de hormigas. Cuando las hormigas escalan hasta la mitad de la longitud, los chimpances deslizan por las ramas su puño cerrado y empujan las hormigas hacia su boca. También llevan directamente las ramitas a sus labios.
      4. Los chimpancés del Bosque de Kibale utilizan palos para llegar a la miel en un tronco caído, mientras que los del Bosque de Budongo utilizan para ello hojas masticadas como esponjas.
      5. Introducen trozos de corteza finos y flexibles en los  termiteros para extraer las termitas que se comen.
      6. Extraen con ramitas la médula de los huesos de los monos que han devorado.
      7. Se sientan sobre un cojín de grandes hojas cuando el suelo está húmedo.
      8. Utilizan ramas llenas de hojas como espantamoscas.
      9. Utilizan gruesas piedras o palos para hacerse cosquillas.
      10. Lanzan objetos hacia blancos precisos, aunque rara vez los alcanzan.
      11. Se pasan por las heridas hojas a veces machacadas previamente. Ingieren plantas como método curativo.
      12. Trituran hojas secas con los dientes o golpean superficies duras con los dedos doblados para hacer ruido y llamar la atención.
      13. Colocan en una hoja los piojos que capturan para machacarlos más fácilmente. Dejan en un antebrazo los parásitos en general para aplastarlos allí antes de comerlos.
      14. Se dan la mano por encima de la cabeza mientras se asean mutuamente con la otra mano.
      15. Cuando comienza un chaparrón, arrastran ramas, baten el suelo, golpean raíces y lanzan gritos.
      16. Conductas de duelo ante el fallecimiento de un miembro del grupo.
      William McGrew afirma que la razón por la que los chimpancés no utilizan herramientas más a menudo es porque no pueden transportarlas fácilmente. Tienen que fabricarlas en el lugar de su uso y como consecuencia no ponen mucho empeño en su fabricación y las que utilizan no son refinadas.


      La transmisión cultural corre a cargo de las hembras en su mayor parte (Lind y Patrik, 2011)

      En cuanto a los hábitos de caza, en Taï Forest, Gombe y Ngogo, los chimpancés participan en cacerías, aproximadamente, una vez cada dos o tres días, con un éxito aproximado del 50%. La mayoría de las cacerías se centran en monos, particularmente en el colobo rojo. Los chimpancés de Gombe, también cazan cerdos salvajes y una especie de antílope selvático del tamaño de una oveja. Ninguno de estos grupos se alimenta de carroña y raramente arrebatan las presas a otras especies.
      Mientras que las cacerías de Gombe y Ngogo parecen surgir de encuentros oportunistas con grupos de monos, alrededor de la mitad de las de Taï empiezan antes de que haya ningún tipo de presencia de monos en los alrededores.


      http://www.diariosur.es/v/20100911/cultura/sociedad-sexual-bonobos-20100911.html
      http://animals.nationalgeographic.com/animals/photos/chimps/

      sábado, 6 de octubre de 2012

      Los primeros fósiles humanos de Europa.

      Homo antecessor. Reconstrucción a partir de varios fósiles de Atapuerca.

      POCAS RESPUESTAS

      Los restos de Atapuerca, datados en 1,3-0,73 Ma demuestran una ocupación temprana de Europa. Quienes eran aquellos Homo y por dónde llegaron, son preguntas difíciles de responder. Quizá estuvieron en Europa algunos contingentes de erectus. Se han comunicado algunos hallazgos, escasos y controvertidos. Si lo hicieron, se extinguieron pronto o constituyeron grupos marginales. Los hombres de la Sima del Elefante se diferencian del erectus, pero guardan algunas similitudes con los ejemplares hallados en China. Es posible que procedieran de la misma migración de África hace 1,9 Ma. Su viaje por Europa debió recorrer el Corredor de Levante, al mismo tiempo que sus organismos se adaptaban a las condiciones ambientales hasta constituir un demo diferenciado que daría lugar al Homo antecessor.

      HOMBRE DE ORCE

      Descubierto en 1982 en las excavaciones dirigidas por J. Gibert Clols en la cuenca de Baza (Venta Micena, Orce, Granada). Durante el Pleistoceno inferior existió allí un gran lago interior.
      Se trata de la parte posterior de un cráneo de un niño de no más de cinco años, datado en 1,3-1,2 Ma. Al ser un resto tan fragmentario y presentar una cresa prominente, ha generado mucha controversia, pero en 2003 se halló en Francolí (Tarragona) el esqueleto de un niño, en una necrópolis del siglo IV, con la misma cresta.
      También se halló una posible diáfisis humeral.
      En Cueva Victoria se hallaron una falange de un dedo y dos fragmentos humerales, datados en 1 Ma.
      En Barranco León aparecieron fragmentos molares.
      En los mismos lugares se hallaron restos del primate Teroithecus oswaldi. La mayoría de los investigadores atribuyen todos los restos a esta especie.
      En Fuente Nueva 3 y Barranco León 5, aparecieron restos olduvaienses, datados en 1,3 Ma. En Fuente Nueva hay evidencias de acción humana sobre herbívoros para consumir carne y tuétano.

      YACIMIENTO DE ATAPUERCA

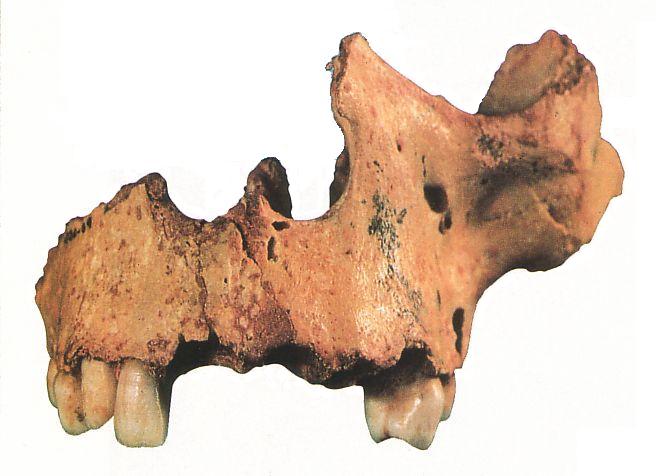
      En la cueva de la Sima del Elefante se halló en 2007 ATE9-1, un fragmento de mandíbula datado en 1,3 Ma y un premolar inferior de leche. La mandíbula no pudo ser atribuida a ninguna de las especies hasta entonces descritas. Incluye la región de la sínfisis, donde convergen las dos ramas mandibulares, la derecha conservada hasta el alveolo del primer molar y la izquierda hasta los alveolos del primer y segundo molar.
      En 2011 se encontraron restos líticos y fósiles animales con marcas de corte de aproximadamente 1,2 Ma.
      Los restos de macromamíferos sugieren abundantes zonas de agua, con hipopótamos y águilas pescadoras y condiciones templadas.

      A partir de 1976, se recogen de la Gran Dolina de Atapuerca (Burgos) restos que alcanzan más de 0,73 Ma. Sobresalen:

      • ATD6-15. Restos parciales de la cara de un niño entre 10 y 11,5 años de edad. Datado en 0,78 Ma (Bermudez de Castro et al 1997). Conserva el torus derecho y parte de la región de la glabela. Senos frontales muy desarrollados. La capacidad craneal pudo llegar a 1.000 cc.
        • 6 fragmentos de hueso temporal.
        • 2 fragmentos de hueso occipital.
        • 1 fragmento de esfenoide.
        • 5 fragmentos faciales.
      • ATD6-69. gran parte de la cara, de un individuo entre 10-12 años. Morfología totalmente moderna, con rasgos más cercanos a los de los cráneos de Zhoukoudián y Dali y a los de Cromañón que a los neandertales.
      • ATD6-5 media mandíbula con sus tres muelas de un individuo joven. M3 está saliendo torcida, lo que debió originar dolor de muelas e incapacidad de morder. Sin los rasgos característicos de los preneandertales y pocos rasgos parecidos a los del ergaster.
      • 14 dientes aislados. Más parecidos a ergaster que a preneandertal. Las raíces de los premolares P3 y P4 y las coronas son similares a las del grado erectus de Java o a las de australopitecos.
      • 14 fragmentos de maxilar.
      • Vértebras, costillas incompletas, clavículas, algunos huesos largos de piernas y brazos, 12 huesos de manos y 10 de pies.
      • ATD6-22 Y ATD6-43, fragmentos de radios, el segundo casi completo. El índice braquial y las proporciones son más próximos a los del ergaster y a los de los humanos modernos que a los de preneandertales y neandertales.
      • ATD6-121. Húmero infantil.
      • ATD6-148. Rafa. Húmero izquierdo de adulto muy joven vigoroso. Quebrado para obtener la médula. Marcas de descarnado y destrozo de los cóndilos para separar las masas musculares.
      Los cráneos tienen más de 1.000 cc y el torus supraorbital de doble arco es claramente distinguible del erectus. Los dientes son muy parecidos a los del grado erectus. Está presente la fosa canina, ausente en los erectus de Asia.

      La industria lítica hallada es pre-achelense, Modo 1 o olduvaiense evolucionado, con ausencia de hachas de mano. Se encuentran representadas todas las fases de reducción y transformación de materiales líticos, desde bolques simples sin tratamiento, de donde se deduce el propósito de explotación diferida, hasta configuraciones terminales y útiles. La actividad productiva de taller en el sitio se ha confirmado mediante diversos remontajes. Predominan las bases positivas, de las que son minoría las retocadas. Se ha comprobado su utilización para cortar carne, preparar huesos para romperlos, descortezar y raer madera y posiblemente se utilizasen también para tratar la piel.
      Estos seres utilizaban distintas estrategias para cazar, iban en grupos con un número variable de miembros y transportaban las piezas de diferentes formas, seleccionándolas o no según su tamaño, la hora del día, la distancia a la base o la presencia de otros carnívoros en el entorno. De estos hechos podemos inferir una gran complejidad social con reparto de tareas (Palmira Saladié, 2011). La presencia de costillas (que son consumidas por los grandes depredadores) y de marcas de corte realizadas con cuchillos de piedra permite deducir que mataban ellos mismos a estos animales. Los restos humanos presentan las mismas huellas de tratamiento con herramientas de piedra que los restos de animales de lo que se deduce un canibalismo gastronómico.
      Del conjunto faunístico asociado se deduce un ambiente de bosque abierto o con pradera en proximidad y un remanso o laguna muy cercano, con un clima cálido, de humedad estacional; unas condiciones climáticas similares a las de los actuales inviernos en la zona. En este tiempo, la cavidad de la Gran Dolina fue un lugar de consumo.
      Los restos de polen sugieren una recuperación de temperaturas después de una fase fría.

      La clasificación de los restos de La Sima del Elefante.

      Lo habitual para los restos europeos de transición era clasificarlos como heidelbergensis.
      Para Carbonell (1995), se trataría de un taxón diferente al erectus (que se extingue) y al ergaster (que daría lugar al sapiens).
      Howell le asignó el paleodemo Atapuerca-Gran Dolina.
      El equipo de Atapuerca propuso en 1997 la nueva especie Homo antecessor, con una topografía mediofacial completamente moderna y otros rasgos que lo apartaban de erectus, ergaster y neanderthalensis.
      ·         Está relacionada con los pobladores del Pleistoceno antiguo de China. Ambos demos procederían del grupo que abandonó África hace 1,9 Ma. Para comprobar la relación sería necesario hallar fósiles de este periodo en el este de Europa y oeste de Asia.
      Para Emiliano Aguirre (2008) y Bermúdez de Castro (2010) no tendría relación filogenética directa ni con erectus ni con heidelbergensis o sapiens.
      Aguirre (2000) es defensor de la teoría mutirregional de evolución hacia el sapiens y cree que rasgos faciales compartidos por antecessor, erectus y sapiens indican un aporte genético muy variado como origen de los humanos actuales.


      MORFOLOGÍA FACIAL
      ESCAMA TEMPORAL
      Homo habilis
      Homo rudolfensis
      Cara plana o cóncava.
      Placas infraorbitales dispuestas coronalmente, verticales u orientadas hacia arriba.
      La apertura nasal no se sitúa por delante de las placas infraorbitarias.
      Borde bajo y rectilíneo.
      Grado erectus
      Cavidad nasal ligeramente más adelantada respecota a las placas infraorbitarias.
      Huesos nasales dispuestos más horizontalmente.
      Borde bajo y rectilíneo.
      Homo antecessor
      Placas infraorbitales orientadas coronalmente e inclinadas hacia abajo, con fosa canina.
      Borde elevado y arqueado.
      Homo neanderthalensis
      Cara de aspecto apuntado.
      Cavidad nasal situada más hacia delante que en las demás especies.
      Huesos nasales dispuestos horizontalmente.
      A ambos lados de la nariz, las paredes de la cavidad nasal y las placas infraorbitarias forman una única superificie sin fosa canina, orientadas oblicuamente.
      Borde elevado y arqueado.
      Homo sapiens
      Con fosa canina
      Borde elevado y arqueado.
       

      CRÁNEO DE CEPRANO


      En 1994 Italo Bidditu halló en Ceprano, Frosinone, Italia un cráneo que conserva prácticamente toda la bóveda, pero sin base, cuya capacidad podría ser hasta de 1.200 cc. Se ha datado en más de 800 ka. No está asociado a macro o microfauna, restos polínicos ni industria lítica, por lo que hay que pensar en un arrastre.
      • Antonio Ascenzi lo considera como Homo erectus,
      • Se le ha asignado a una nueva especie: Homo cepranensis (Mallegni et al, 2003).
      • Manzi et al (2001) opinan que podría representar un estado intermedio entre erectus por una parte y heidelbergensis y rhodesiensis por otra.

      HALLAZGOS DE HERRAMIENTAS LÍTICAS


      No son muchos, pero en todo caso confirman la ocupación temprana del sur de Europa. Destacan los siguientes.

      El yacimiento de Soleihac (Haute-Loire, Francia) está datado en 1,07-0,99 Ma.
      Le Vallonnet (Roquebrune-Cap Martin, Alpes Marítimos, Francia) en 0,9 Ma.

      En España hay yacimientos datados en más de 0,75 Ma en Barranco León, Fuentenueva-3, Monfarracinos, Galisteo, Talavera, El Espinar, Atapuerca y Huéscar.
      En Cueva Negra, Caravaca de la Cruz, Murcia, apareció tecnología achelense datada en 0,9 Ma, con restos de fauna quemada y trozo de sílex deformado por el fuego.
      En Vallparadis, Terrasa, Barcelona hay un yacimiento olduvaiense datado en 0,9 Ma, con restos de fauna asociados.

      En Monte Poggiolo (Forli, Emilia Romagna, Italia) hay un yacimiento lítico datado en 0,9 Ma.

      Happisburgh, Norfolk, Inglaterra, es el primer asentamiento conocido al norte del paralelo 45. Datado en 0,8 Ma. Descubierto por Simon Parfitt et al (2010).

      viernes, 5 de octubre de 2012

      Relación entre dieta, organismo y evolución del cerebro.


      No está clara la asociación entre las primeras herramientas olduvaienses y la obtención de fuentes alimenticias animales. La evidencia más reciente (Braun, 2010) sugiere el uso de recursos lacustres como primera fuente importante de recursos animales entre los homínidos (pescado, tortugas, marisco…) que facilitarían los ácidos grasos poliinsaturados de cadena larga necesarios para el crecimiento y funcionamiento del cerebro.
      Manuel Domínguez-Rodrigo et al (2012) analizaron el fósil OH 81. SHK, Olduvai. 1,5 Ma. Dos fragmentos de la parte posterior de un parietal derecho de un infante de unos dos años, de especie indeterminada, pero probablemente perteneciente al grado erectus. Los restos muestran hiperostosis ósea osteoporótica, una patología asociada con la anemia y sugiere una fisiología adaptada al consumo regular de carne.
      Tras la domesticación del fuego y su utilización para cocinar, se maximizó la extracción de energía de los alimentos y se acortó el tiempo de masticación y digestión. En una hora, el humano fue capaz de consumir más calorías que el chimpancé en cinco.

      El tejido cerebral consume una cantidad muy grande de oxígeno y glucosa. A su vez, el córtex humano muestra hasta un 43% más de índice metabólico que el resto del cerebro. Ese sobrecoste del córtex depende del grado de desarrollo evolutivo de la materia gris.
      Según el estudio de Aiello y Wheeler (1995) acerca de la relación que existe entre tamaño cerebral y longitud del intestino los primates folívoros, con intestinos más grandes, tienen cerebros relativamente más pequeños que los primates frugívoros. Los frugívoros controlan territorios más amplios y recursos cambiantes en el espacio y el tiempo y pertenecen a grupos sociales más amplios. Las características alimentarias, gustativas, metabólicas, cerebrales, morfológicas, cognitivas y conductuales forman un sistema autocatalítico.
      ·         Para explicarlo, enuncian la hipótesis del tejido costoso: Dos especies diferentes de animales, con una tasa metabólica similar, deberían “elegir” entre tejidos intestinales y tejidos cerebrales. Como la dieta folívora exige intestinos muy grandes para la digestión, ese sistema digestivo costoso sería una barrera para una alta encefalización.
      o    En un estudio sobre 100 mamíferos, entre ellos 23 primates, Ana Navarrete et al (2011) no encontraron relación entre el tamaño del cerebro y el de los otros órganos. Si solo se consideran los primates, la correlación es positiva. Se encontró en cambio correlación negativa entre el tamaño del cerebro y la grasa acumulada: un mamífero más inteligente puede ser más delgado, no necesita acumular mucha grasa. Pero los humanos tenemos relativamente más grasa que los chimpancés y bonobos.
      Los entornos lacustres proporcionaron a nuestros ancestros una excelente fuente de proteínas y ácidos grasos poliinsaturados, complementando la caza y el carroñeo.
      El destete precoz en los humanos con respecto al resto de los antropoides, junto con el suplemento de alimentos nutritivos, sería esencial para el desarrollo del cerebro en los primeros años de vida.

      Teorías que afirman la importancia de la dieta carnívora.

      ·         Katherine Milton (1988) apunta como única salida para la demanda metabólica del cerebro en el género Homo la de un cambio de dieta hacia nutrientes de mayor rendimiento, carne en esencia.
        • Una interpretación así parece chocar con un obstáculo como es el de un tamaño relativamente bajo del intestino de los humanos cuando se compara con los demás primates. Que el cerebro necesite más nutrientes y el intestino disminuya de tamaño podría parecer algo extraño. Para Milton, eso se explica porque el aparato digestivo humano está especializado, con un intestino delgado relativamente grande.
      • Glynn L. Isaac y Owen Lovejoy destacan la importancia de los comportamientos sociales alrededor del reparto de alimento y en particular de la carne.
        • Según Lovejoy, el aprovisionamiento de carne es asegurado por los machos cazadores que la ofrecen a sus hembras a cambio de la exclusividad sexual.

       Teorías que niegan la importancia de la dieta carnívora.

      v  Robert Martin (1996):
      o    Apunta que la correlación entre dieta carnívora y alta encefalización se ve contradicha por el cerebro pequeño de los murciélagos insectívoros, cuyo intestino es relativamente menor al de los murciélagos que se alimentan de frutas.
      *       Aiello y Wheeler no dicen nada sobre lo que debe suceder cuando el tracto digestivo es corto.
      o    Lanza la hipótesis de la energía materna: El crecimiento del cerebro de un primate se realiza en el feto, durante el embarazo y en la exterogestación (lactancia), así que la variable a considerar es la de los recursos energéticos de que dispone la madre tanto mientras está embarazada (metabolismo basal materno) como en el periodo que alimenta a sus hijos. Una madre produce hijos con cerebros grandes tanto incrementando el periodo de gestación como aumentando la tasa metabólica (dieta).
      o    Recuerda no obstante que puede aparecer un incremento del tamaño cerebral relativo a causa de la existencia de presiones selectivas hacia cerebros más grandes y complejos.
      o    Lehrke (1972) sugirió que los genes que codifican las funciones intelectuales se localizan en el cromosoma X de la madre (imprinted genes).
      v  Richard Wrangham et all., insisten en el papel del fuego y la cocción en la liberación de la energía necesaria para el desarrollo cerebral. Después de la cocción, se duplica la asimilación del almidón. Esta hipótesis minimiza el papel de la carne y se ve respaldada por el poderoso aparato masticador de los homínidos, bien adaptado para tubérculos, rizomas, bulbos y raíces; la morfología de nuestro tracto intestinal, parecida a la de los frugívoros; y nuestras percepciones gustativas.
      o    Las huellas más antiguas de utilización del fuego datan de 1,4 mda. En este momento Homo ergaster convive con parántropos y muestra un esmalte dental más fino. Esta reducción pudo ser posible debido a la alimentación carnívora, a la cocción o a ambas a la vez.
      o    A partir del ergaster, el tamaño cerebral aumenta mientras que el de los dientes disminuye.
      o    Nunca se ha cocinado tanto como hoy; sin embargo, el sapiens actual tiene un cerebro 300 cc más pequeño que el del neanderthalensis o el sapiens de Cro-Magnon.

      miércoles, 3 de octubre de 2012

      Colonización de Europa por el Homo sapiens.


      La entrada en Europa de los primeros Homo sapiens procedentes de Asia Central, es decir la segunda oleada de población humana hacia Europa se produce hace unos 45 ka. Según las evidencias genéticas, la piel clara comenzó a generalizarse entre los europeos hace 19-11 ka.
      Los yacimientos más antiguos con restos humanos de cromañoneses son:
      1. Grotta del Cavallo (sur de Italia). Dos dientes de leche descubiertos en 1964 y atribuidos a neandertales hasta que en 2011 Stefano Garzelli, Katerina Douka et al los clasificaron como sapiens. Conchas marinas en el mismo estrato fueron datadas en 45-43 ka. Están asociados a la cultura uluzziense.
      2. Cueva de Kent (Torquay, suroeste de Inglaterra, 1927). KC4. Mandíbula con tres dientes, datada por Chris Stringer y Thomas Higham en 44-41 ka, a partir de los restos animales asociados.
      3. Pestera cu Oase (Rumanía). Restos datados en 40 ka, con amplios márgenes de error.
        1. En febrero de 2002, los espeleólogos Ştefan Milota, Bîlgăr Adrian y Sarcina Laurentiu descubrieron Oase 1, una mandíbula madura completa. con una serie de características modernas como el mentón, la ausencia de arco superciliar y un cerebro de alto y redondeado. Sin embargo, varios aspectos arcaicos del cráneo y la dentición colocan el hallazgo fuera del rango de variación de los humanos modernos, como una cara grande, una cresta grande de hueso detrás del oído y dientes grandes, en aumento hacia atrás. Este mosaico de humanos modernos y neandertales se asemeja a las características similares que se encuentran en un fósil de 25.000 años de antigüedad de un niño en Abrigo do Lagar Velho, o en los hallazgos de Mladec.
        2. En junio de 2003 un equipo de investigación con Stefan Milota, Ricardo Rodrigo y Mircea Gherase descubrieron varios restos:
                                                i.    Oase 2. Un esqueleto craneal anterior de adolescente.
                                               ii.    Oase 3. Un hueso temporal izquierdo casi completo, del mismo individuo.
                                              iii.    Fragmenos de lóbulos frontal, parietal y occipital.
      1. Mladec (Moravia, República Checa, 1881) datado en unos 32.000 años; la mayoría de los restos fueron destruidos al término de la IIª Guerra Mundial. Gran variabilidad, sobre todo en la robustez. Moño occipital en algunos individuos, probablemente masculinos. Relieve supraorbital formado por una parte lateral y una medial separadas por un canal, típico de la morfología moderna. Portaban un marcador genético con origen hace 30.000 años.

      Mediante un estudio de marcadores del cromosoma Y se han identificado diversas oleadas migratorias en los actuales europeos.
      1. La primera hace 35.000 años (la cultura auriñaciense).
      2. Después de la retirada de los hielos de la última glaciación (16.000 años) tiene lugar la oleada de la cultura gravetiense
      3. Y hace 9.000 años una última oleada, la del neolítico parece ligada al desarrollo de la agricultura y la domesticación de animales. Pero el estudio genético muestra que sólo el 20% de los europeos actuales tiene marcadores neolíticos en su cromosoma Y por lo que parece que las sustituciones no fueron masivas sino parciales dentro de las diferentes oleadas migratorias del Homo sapiens. Se trató más bien de una oleada cultural.
      Los árboles genéticos europeos muestran que los grupos más remotos son los lapones y los sardos
      1. A continuación, griegos y yugoslavos.
      2. Pero el grupo que antes se separa del resto de las poblaciones europeas es el vasco que puede considerarse como un pueblo proto-europeo.
      Salida de África e hibridaciones del sapiens. http://www.pasthorizonspr.com/wp-content/uploads/2011/09/abr3.jpg

      El vasco no está relacionado con ninguna familia de los idiomas existentes en el mundo. Puede que haya sido el lenguaje hablado en Europa hasta la llegada, hace 10.000 años, de los inmigrantes neolíticos, que importaron la primera lengua indoeuropea al mismo tiempo que la agricultura y otros avances culturales. El área hoy ocupada por los vascos es, además, el centro geográfico del arte Paleolítico de las cuevas. Figuritas de hueso, marfil, o piedra representando mujeres, animales y ciertas criaturas enigmáticas aparecen en distintos lugares de Europa (y, curiosamente, en ninguna otra parte del mundo) hace alrededor de 30.000 años, durante el Paleolítico Superior. Pero los magníficos ejemplares de expresión artística que son las pinturas del interior de cuevas como las de Altamira en España y, en Francia, Lascaux y Vallo-Pont-d’Arc en el Ardeche, descubierta en 1995, sólo existen en una región centrada alrededor del territorio ocupado hoy por los vascos.
      Según Lluís Quintana-Murci et al (2012), los vascos comparten los mismos rasgos genéticos con otras poblaciones europeas, pero al mismo tiempo, presentan algunas variantes locales que la hacen única.

      martes, 2 de octubre de 2012

      Homo habilis.

      KNM-ER 1813. Homo habilis/rudolfensis. Wikipedia.


      Homo habilis, surge a partir de un australopitecino grácil, sin que podamos precisar cuál. Es posible que no lo hayamos encontrado todavía o que nunca aparezca.


      Edad. 2,5 Ma. (Enfriamiento del clima y desarrollo de la sabana africana) – 1,6 Ma.

      Yacimientos y fósiles:

      PRINCIPALES FÓSILES
      YACIMIENTOS
      CRÁNEOS
      MANDÍBULAS
      POSCRÁNEOS
      Olduvai, Tanzania
      Louis y Mary Leakey y Philip Tobias
      N. Mbuika.
      Peter Nzube.
      Donald Johanson y Tim White
      OH 7
      OH 13
      OH 16
      OH 24 Twiggy
      OH 62
      OH 7
      OH 8
      OH 35
      OH 62
      Koobi Fora, Lago Turkana, Kenia
      Richard Leakey
      ER 1470
      ER 1590
      ER 1813
      ER 3732
      ER 1482
      ER 1501
      ER 1802
      ER 1805
      ER 813
      ER 1472
      ER 1481
      ER 3228
      Omo, Etiopía
      L 894-1
      75-14
      222-2744
      Hadar, Etiopía

      AL 789

      Chemeron, Baringo Basin, Kenya
      KNM-BC 1


      Malawi

      MK 45


      Holotipo:
      OH7 “Niño de Johnny” (Johnny´s child). Individuo joven hallado en 1960 por Jonathan Leakey, hijo de Louis y Mary. Huesos parietales, parte alveolar del maxilar provista de dientes y trece huesos de la mano que justificaron el nombre de Homo habilis.
      Paratipos:
      1.     OH4. Fragmentos del cráneo y dientes.
      2.     OH6. Fragmentos del cráneo y dientes.
      3.     OH8. Parte de los huesos del pie de un adulto.
      4.     OH13 Cinderella. Cráneo incompleto de un adolescente.
      Problemas de clasificación
      Los restos hallados por los Leakey entre 1960-1964, apuntaban hacia un australopitecino grácil muy antiguo. Leakey, Tobias y Napier defendieron incluir todos los hallazgos en una nueva especie: Homo habilis.
      Las diversas críticas, opuestas entre ellas, que sufrió esta clasificación es quizá la mejor prueba a favor de aquella propuesta. Los ejemplares mostraban una morfología intermedia entre los australopitecinos y el Homo erectus. Pero ¿por qué ubicarlos en el género Homo?
      La taxonomía toma en cuenta, por encima de cualquier otra consideración, la morfología de los especímenes y en esto se basó Leakey. Con el tiempo, se ha impuesto también una identificación basada la conducta. Las diferencias entre Australopithecus y Homo son básicamente culturales:
      • la construcción de herramientas en piedra para el carroñeo, basada en la presencia de un cerebro lo bastante grande para llevar a cabo las complejas operaciones cognitivas necesarias. Estamos ante el primer homínido que fue capaza de modificar intencionalmente el entorno. Homo sería el responsable de la cultura lítica olduvaiense y H. habilis su primer representante. Habilis significa en latín: capaz, habilidoso, mentalmente desarrollado, vigoroso.
      • Cambios conductuales. Los yacimientos parecen indicar que, tras el rápido troceamiento de animales muertos con herramientas preparadas, trasladaban el botín obtenido a lugares específicos de reunión del grupo, donde se repartía. Compartir los alimentos y proteger las crías son las innovaciones conductuales más destacadas.
      • Gracias a las herramientas, el índice de eficacia en la adquisición de nutrientes es más elevado, lo que permite costear un cerebro más grande.
      Dificultades de clasificación de Homo habilis.
      Ya separadas las especies “robustas” hace 3,5 Ma, un segundo nodo (2,5 Ma) daría lugar al Homo habilis que sería el antecesor de todos los demás homínidos “modernos” del Pleistoceno y Holoceno época en la que nos encontramos. La rama grácil de los homínidos se especializa por entonces en manufactura de instrumentos líticos y las herramientas de piedra más antiguas cuentan con esa edad.
      Colaboradores de Kimbel descubrieron en 1994 un maxilar superior casi completo en Hadar, de antigüedad superior a 2,3 Ma, que confirmaba la separación de linajes en aquella fecha. Los estudios paleoambientales indican que la región de Hadar albergó extensiones abiertas de sabana en el Plioceno tardío. Ambos datos concuerdan con el modelo del género Homo como resultado de la adaptación a los espacios abiertos a través del uso de herramientas.
      Al igual que los Australopithecus y Paranthropus los Homo habilis se desarrollan en el Este y Sur de África y allí permanecen hasta su extinción, sustitución o dilución genética en sus descendientes: el grado erectus (Homo erectus/ergaster).
      La variabilidad de los hallazgos es muy grande: 30-50 kg y 500-800 cc de capacidad craneal. Esto ha dado lugar a diversas interpretaciones:
      ·         Una sola especie con fuerte dimorfismo sexual y variación geográfica (Walker 2002, Tobias, White, Howell, Wood, Collard).
      ·         Los Leakey y Clarke (1971) distinguieron dos grupos en los restos de Olduvai que podrían pertenecer a dos especies distintas: los ejemplares más grandes verdaderos H. habilis, mientras que los de menor tamaño serían supervivientes tardíos de Australopithecus.
      ·         En 1972 Richard Leakey halló ER-1470, con un cerebro mayor, esqueleto facial más grande, ancho y plano, torus poco marcado y mandíbula y dientes mayores. Para algunos, constituye un nueva especie (Homo rudolfensis o Kenyanthropus rudolfensis). Para Alexeev (1967) y Wood (1993) los individuos de Olduvai serían habilis mientras el resto serían de otra especie que llamó Homo rudolfensis. Rudolfensis es más grande que habilis. Wood y Collar (1990) han propuesto incluir ambas especies en el género Australopithecus: El esqueleto postcraneal de OH 62 es prácticamente idéntico al del Australopithecus afarensis, con conservación de la conducta trepadora.
      ·         Rightmire (1995) no acepta rudolfensis, pero defiende la presencia de una especie más pequeña Homo sp., tanto en Olduvai como en Koobi Fora. Una revisión de 2007 situó los hallazgos atribuidos a rudolfensis dentro del rango del habilis.

      El hallazgo en Turkana de un especimen de habilis datado en 1,44 mda implica que habilis y erectus convivieron en la misma área durante medio millón de años y convierte en insostenible la secuencia habilis->erectus.

      Características.
      1. Capacidad craneal 650 cc.
        1. Hay un aumento de la corteza cerebral, en las áreas asociativas parietales (área de Wernicke) y occipitales, sin correspondencia con el aumento corporal, obligando a producir reestructuraciones corticales importantes. El lóbulo frontal inferior (área de Broca) aumenta en superficie y complejidad.
        2. El hemisferio derecho es ligeramente mayor que el izquierdo y se extiende más hacia el polo frontal mientras que el izquierdo lo hace hacia el polo occipital.
        3. El aumento cerebral pudo deberse a una mutación en los genes reguladores (heterocronía). El aumento cerebral produjo una mayor inmadurez neurológica en los recién nacidos, alargando el tiempo de infancia. Esto condujo a una conducta social protectora.
        4. Curvatura del hueso parietal presente en el perfil de la caja craneana mientras que en los Australopithecus está muy poco afianzada.
        5. El ángulo formado por las dos partes del hueso occipital es abierto (afilado en los australopitecos.
      2. Ausencia de cresta sagital. Huellas acusadas de las inserciones musculares en el cráneo.
      3. Toro supraorbital.
      4. Un metro de estatura.
      5. Aparato masticador semejante al hombre actual, con los incisivos más grandes. Tercer molar apenas más grande que el segundo.
      6. Escaso prognatismo. La región del mentón está retrasada.
      7. Clavícula semejante a la de los humanos modernos.
      8. Pudiera ser que H. habilis retuviese las extremidades inferiores de un trepador (Groves, Stringer, Walker, R. Leakey). Últimas falanges de las manos anchas. La articulación entre pulgar y metacarpo se parece a la de sapiens. Las marcas de unión de los tendones de los músculos flexores son fuertes y las falanges son curvadas.
      9. Bipedestación completa. Huesos del pie parecidos a los de humanos modernos, con un hallux corto y robusto. La articulación del tobillo difiere un tanto y el tercer metatarso parece robusto.
      10. Del examen de los dientes de deduce un patrón de desarrollo rápido, como el de los chimpancés.
      Modos de Vida.
      1. Construcción de herramientas. (Cultura Olduvaiense (Modo I): Choppers (piedras cortadoras labradas por una sola cara quizá de un solo golpe preciso sobre la piedra núcleo) y lascas).
      2. Omnívoro oportunista. ¿Carroñero? ¿Cazador de piezas pequeñas? ¿Ambas cosas? Según Henry Bunn, en un yacimiento de la garganta de Olduvai se encontraron evidencias de caza con emboscada hace 1,6 Ma.
      3. Machacaban huesos para obtener el tuétano.
      4. Elaboración de complejas funciones cognitivas para la actuación en grupo y la enseñanza de tecnología.