Mostrando entradas con la etiqueta Evolución. Mostrar todas las entradas

sábado, 24 de marzo de 2012

Modelo PRM de A. L. Hughes.

Lamentablemente no podemos ofrecer un texto alternativo accesible para esto.  Si necesita ayuda para acceder a esta imagen, por favor póngase en contacto con help@nature.com o el autor
Esquema del modelo PRM. A. L. Hughes (2012).

La plasticidad fenotípica es la habilidad de los organismos para que un mismo genotipo pueda producir diferentes fenotipos. Esta plasticidad puede ser resultado de una adaptación evolutiva o un producto del azar..

Para simplificar, consideremos dos fenotipos A' y B' que se expresan respectivamente en los entornos A y B 
Un interruptor genético determina qué fenotipo se expresa como resultado del medio ambiente. 
Si hay un cambio del medio ambiente de tal manera que el organismo se enfrenta ahora sólo al entorno A, una mutación que eliminase la posibilidad del feotipo B' ya no es perjudicial. Por lo tanto, si tal mutación pasa a producirse, puede ser fijada por la deriva genética. De esta forma, el fenotipo A' se convertirá en el único y permanente fenotipo de la especie.
Este modelo se denomina plasticity–relaxation–mutation (PRM). Consiste en una plasticidad fenotípica ancestral seguida por la especialización en un entorno y la expresión permanente de un fenotipo alternativo debido a que las mutaciones que eliminan las vías que conducen a los fenotipos alternativos son fijadas por la deriva genética.


El mecanismo de PRM es probable que sea importante para el origen de las adaptaciones y tal vez más común que el mecanismo neodarwinista, sobre todo cuando la evolución ha sido acelerada, como sucede en la domesticación.


En el modelo de West-Eberhard (1986, siguiendo a Waddington, 1953), la selección positiva corrige la mutación que elimina la vía b . Pero esta suposición es innecesaria.

Los mecanismos epigenéticos, como la metilación del ADN, se sabe que tienen un papel en la plasticidad fenotípica (Youngson et al, 2010 ), y pueden estar involucrados en la inactivación del fenotipo inapropiado que se postula en el modelo PRM, pero este silenciamiento tampoco es necesario para el modelo.

Varios estudios han descrito grupos de taxa estrechamente relacionados, en los unas especies o demos muestran plasticidad fenotípica con respecto a un determinado rasgo, mientras que otros muestran la fijación aparente de sólo uno de los fenotipos alternativos. Por ejemplo, las poblaciones de serpientes tigre (Notechis scutatus) que han colonizado las islas en diferentes en momentos que van desde 30 a 9000 años atrás muestran diferencias en el tamaño de la cabeza que se correlacionan con el tamaño de la presa. En los colonizadores recientes, un tamaño grande de la cabeza (que confiere la capacidad de ingerir grandes presas) se logró mediante la plasticidad fenotípica, mientras que en los colonizadores antiguos la plasticidad se perdió y el tamaño de la cabeza ha sido genéticamente asimilado.

Los eventos genéticos que subyacen a la evolución de novedades fenotípicas generalmente implican pérdida (por ejemplo, delección del gen, la pérdida de expresión en un tejido determinado...) en lugar de ganancia .Numerosos rasgos humanos son el resultado de la pérdida de secuencias reguladoras conservadas en otros mamíferos.

http://www.nature.com/hdy/journal/v108/n4/full/hdy201197a.html?WT.ec_id=HDY-201204

jueves, 29 de diciembre de 2011

Selección sexual.

Darwin se dio cuenta de que su teoría de la selección natural quedaba rebatida por algunos casos muy aparentes en los cuales algunas estructuras de los individuos anulaban o restringían la capacidad de subsistir y reproducirse. Por ejemplo, las abejas y hormigas obreras son estériles y los adornos de los machos en muchas especies solo sirven para atraer a los depredadores o dificultar la huida.
Pavo real.

Darwin tuvo entonces que recurrir a otra teoría que explicase estas anomalías.

Según Darwin (1871), la selección sexual es el proceso mediante el cual los miembros de un sexo, generalmente machos, compiten entre sí para el acceso reproductiva a los miembros del otro sexo, por lo general las hembras (selección intrasexual). La selección sexual tendría, según él, más influencia en las especies polígamas y modificaría en mayor medida a los machos.

Otro tipo de selección sexual consiste en la competición por ganar los favores del otro sexo (elección de pareja, mate choice o selección intersexual).

Mientras que la evolución en los machos de estructuras armamentísticas fue rápidamente aceptada, la evolución de rasgos de exhibición fue rechazada porque se consideraba que las hembras no humanas carecían de sentido estético.

En 1915, Fisher propuso un modelo explicativo del significado biológico de los rasgos de exhibición masculinos. En 1930 elaboró la hipótesis conocida como Selección Sexual Desenfrenada (Runaway Sexual Selection).
Imaginemos que algunas hembras de una especie dada tienen preferencia con base genética por aparearse con con machos con alguna característica especial.

  • Si esta característica de los machos tiene también base genética, los descendientes heredarán los genes involucrados en ambas características.
  • Como consecuencia, tanto el rasgo femenino como el masculino se extenderán en la población


En 1948 Bateman, en su estudio de la mosca de la fruta clásica, interpretó la selección sexual en términos de lucha intrasexual e inversión parental más que en términos de comportamiento intersexual.
En sus experimentos, Bateman estableció 64 poblaciones de la mosca organizadas en nueve 'series', diseñadas para explorar el éxito del apareamiento y de la aptitud para cada sexo. Se observó una diferencia entre los sexos en la varianza de la fecundidad que fue mayor para los machos que para las hembras en cada serie. Bateman también observó que, mientras que sólo el 4% de las hembras no estaban representadas en la descendencia, el 21% de los machos no estaban representados. Resumió sus conclusiones de este modo:
La variación en el número de machos es, por lo tanto, la única causa importante de la diferencia sexual en la varianza de la fecundidad.
La diferencia sexual en la varianza de la fecundidad es una medida de la diferente intensidad de la selección para cada sexo.

En 1975 Zahavi propuso la Hipótesis del Hándicap. Si un macho con rasgos desmesurados o atractivos visulamente es capaz de sobrevivir, será porque es un superdotado, sus genes son de lo mejor.
La Hipótesis de Hamilton-Zuk (1982) señala una relación estrecha entre la capacidad de mantenerse en una forma óptima y la de defenderse de los agentes infecciosos, gracias a una capacidad inmunológica intrínseca bien desarrollada. Las hembras que eligen a los machos más brillantes, están eligiendo también a los más sanos.

lunes, 19 de diciembre de 2011

El concepto de especie. Barreras reproductivas. La especiación.

Los organismos se agrupan en especies. Los individuos que pertenecen a la misma especie son más semejantes entre sí que con respecto a individuos de otras especies.

La categoría especie es útil para la conversación trivial y para los estudios biológicos y todos entendemos lo que la palabra especie significa, pero a la hora de definirla con exactitud, aparecen dificultades derivadas del desacuerdo sobre los procesos que producen nuevas especies.

  • Para el concepto biológico (Dobzhansky, Mayr), una especie es un grupo de individuos que se entrecruzan entre sí y que están reproductivamente aislados de otros individuos.
    • El flujo génico tiende a mantener las semejanzas entre los miembros de la misma especie.
    • Para Jerry Coyne y Allen Orr (2004) el aislamiento reproductivo no es necesariamente completo.
    • Durante el proceso de especiación pueden producirse estados intermedios en los que el estatus de especie es más o menos irresoluble.
    • El concepto recognitivo de especie es más restrictivo que el concpeto biológico e implica un sistema específico de reconocimiento de pareja que supone la impermeabilidad del acervo genético.
    • El concepto de especie en cuanto cúmulo genético (Mallet, 1995) presume que los distintos genomas se distribuyen en grupos discretos. El problema es determinar el grado de diferencia que justifica el reconocimiento de distintas especies.
    • Esta definición no es válida para especies con reproducción asexual, en las que el descendiente toma sus genes de un único ascendiente, ni para los organismos procariotas, sin cromosomas.
  • Para el concepto ecológico, una especie está delimitada por la acción de la selección natural.
    • Se dan casos de especies que intercambian sus genes, pero la selección natural se ocupa de eliminar los individuos con rasgos intermedios.
    • Se dan casos de grupos de individuos aislados entre sí, es decir, que durante miles de años no han intercambiado sus genes y sin embargo son morfológicamente similares y se clasifican dentro de la misma especie.
    • Para el concepto cohesivo de especie (Templeton, 1982) una especie es la población más inclusiva de individuos que tienen el potencial para la cohesión fenotípica mediante mecanismos cohesivos intrínsecos.
      • Mecanismos de intercambio genético.
      • Mecanismos de intercambio demográfico, que definen el nicho fundamental y los límites de la difusión de nuevas variantes genéticas por deriva genética y selección natural.
  • Para el concepto evolutivo de especie (Simpson, 1961) una especie evolutiva es un linaje (clado en la terminología de De Queiroz), una secuencia genealógica de poblaciones, que evoluciona separadamente y tiene su propio rol o destino evolutivo unitario (nicho) y sus tendencias propias (libre para divergir, sin constreñimientos de otra población).
    • El problema está en que los linajes tienen que cortarse en segmentos arbitrarios para los propósitos de la clasificación. La solución consiste en hacer la diferencia entre las especies sucesivas tan grande como la que exista entre especies contemporáneas, pero esto depende fuertemente del juicio personal.
    • Otro problema es que una rama difiera del ancestro mucho menos que otra. ¿Nos encontramos ante dos o ante tres especies?
      • Según la tradición cladista (Hennig) cada evento de especiación entraña la extinción de la especie ancestral. Esto descarta la anagénesis, proceso mediante el que una especie se convierte en otra, sin dividirse en  comunidades sincrónicas reproductivamente separadas. Desde el punto de vista de la Lógica, este modo de enfocar la especiación es correcto, pero desde le punto de vista biológico es problemático. Como criterio para la construcción de la filogenia, el cladismo utiliza la homología: Dos estructuras son homólogas si representan partes correspondientes de dos organismos construidas según el mismo plan temporal. La homología de los órganos delata la existencia de un ancestro común.
        • En cada par de homólogos existen caracteres primitivos o plesiomorfias y caracteres derivados o apomorfias. La clave más importante que delata  el parentesco cercano entre dos especies son las apomorfias compartidas que se denominan sinapomorfias. Los caracteres comunes de origen más remoto o simplesiomorfias no nos dicen nada sobre la cercanía del parentesco. Las autapomorfias son los caracteres derivados privativos de un taxón y carecen de significación filogenética. Un grupo monofilético incluye a todos los organismos con un ancestro común determinado.
      • Según el concepto filogenético de especie (Cracraft, 1983) cada especie estaría caracterizada por una combinación única de caracteres primitivos y derivados que permitiría discernirla entre todas las demás especies. Para Donoghue y Mishler (por separado, 1985) una especie el grupo monofilético menos inclusivo que puede definirse al menos por un autapomorfismo. Según este criterio las especies no se podrían ordenar en rangos fijos, como  género, familia, orden, etc.
Las barreras reproductivas pueden ser de varios tipos:
  • Prenupciales. Por ejemplo, las hembras de una población no responden al canto de los machos de otra. La existencia de este tipo de barrera es una condición necesaria y suficiente según el concepto recognitivo de especie.
  • Postnupciales prezigóticas. Por ejemplo, los espermatozoides no consiguen fecundar el óvulo.
  • Postnupciales postzigóticas: Los híbridos son inviables o no hallan pareja.
Se han identificado varios tipos de especiación:
  • La especiación alopátrica o alopátrida tiene lugar cuando la selección natural favorece fenotipos diferentes en regiones aisladas.
    • Aunque los grupos de individuos se junten posteriormente, pueden actuar dos procesos a favor de la especiación:
      • El desplazamiento de carácter puede ocurrir si la competencia por el alimento, la pareja u otros recursos incrementan las diferencias morfológicas entre los inmigrantes y los residentes.
      • Si los híbridos son menos viables, la selección natrual favorecerá las adaptaciones morfológicas o de comportamiento que impidan los apareamientos entre individuos de diferentes poblaciones. Este proceso es denomiando refuerzo (Blair, 1955).
  • La especiación parapátrica o parapátrida sostiene que puede surgir una nueva especie si la selección natural se combina con un aislamiento genético parcial (un refuerzo).
  • La especiación simpátrica o simpátrida tiene lugar cuando se produce una selección natural fuerte, sin necesidad de aislamiento genético.
    • Cuando una especie se encuentra ante un conjunto de nichos vacíos, puede diversificarse para llenarlos. Este proceso se denomina radiación adaptativa.
    • Este tipo de especiación fue discutida durante mucho tiempo pero existen evidencias recientes de especiación simpátrida en peces cíclidos en lagos volcánicos de Camerún y Nicaragua (Schliewen 2001, Barluenga 2006) y de salamandras en aguas subterráneas en Tennessee (Niemiller, Miller, 2008)

lunes, 7 de noviembre de 2011

El efecto García.

John García (sicólogo estadounidense nacido en 1917), para investigar  los efectos de las radiaciones ionizantes sobre las ratas, les dio a beber (una sola vez) agua radioactiva de una botella de plástico.
El agua, causó un tremendo malestar en las ratas.

Posteriormente comprobó que estas ratas rechazaban el agua contenida en botellas de plástico. Dedujo que los animales asociaban los efectos secundarios (enfermedad interna) de la radiación, al sabor del agua en botella de plástico.

Administró entonces agua radioactiva con sacarina (nuevo sabor) en un recipiente iluminado con luz roja. En lo sucesivo, las ratas rechazaban el sabor a sacarina pero no la botella coloreada con luz roja.

Lo novedoso era:
- El condicionamiento se producía con una sola exposición
- El intervalo entre estímulo condicionado (sabor, olor) y respuesta incondicionada (nauseas, rechazo alimento) era prolongado (más de seis horas incluso)
- El condicionamiento era selectivo. Se establecía con estímulos interiorizados (comida) y no con externos (luces, ruidos)
- Era resistente al des-aprendizaje

El efecto García explica el hecho reconocido de rechazo al sabor de los alimentos consumidos unas horas antes de sufrir náuseas por quimio o radioterapia.

El efecto García indica que la evolución ha establecido un fuerte vínculo entre enfermedad y alimentos y codifica como sospechosa la comida que se haya ingerido unas horas antes de que el individuo se sienta mal.

miércoles, 31 de agosto de 2011

El orden gratuito de Stuart Alan Kauffman

Stuart Alan Kauffman.

Los seres vivos, como sistemas dinámicos que son, tienden a aumentar su complejidad con tanta rapidez como les resulte físicamente posible.

A medida que se fue incrementando la diversidad de moléculas orgánicas, la diversidad de reacciones químicas entre ellas creció mucho más deprisa. La aparición de un conjunto interdependiente de reacciones fue inevitable. La aparición de sistemas colectivos autorreproductores de moléculas es una consecuencia natural en sistemas químicos suficientemente complejos. Estos agentes autónomos están fuera del equilibrio, lo que aumenta la posibilidad de explorar nuevos estados, crecen sus facultades adaptativas y coevolucionan.

En su mayoría, las mutaciones genéticas apenas alteran el sistema. Pero algunas son capaces de provocar una cascada de cambios en cadena, modificando la estructura de la red y provocando un cambio de atractor.

Cada nivel de complejidad presenta sus características y leyes peculiares, no reducibles al nivel anterior. Sin embargo, cada nivel influye en los otros.

La formación de taxones superiores y niveles crecientes de complejidad se deben a una reorganización de los mecanismos reguladores y no a la simple ampliación en la escala de los procesos microevolutivos afirmada por los neodarwinistas.

martes, 30 de agosto de 2011

Modelo del Poliedro de Galton.

Francis Galton. (1822-1911)

Las estructuras heredadas se restringen a los planos adyacentes.

Se trata de una metáfora para ilustrar la limitación en las direcciones en las que un organismo puede evolucionar. El cambio evolutivo se dirige desde dentro aunque se requiere la selección natural como fuerza externa. Por otra parte, el cambio evolutivo puede no ser continuo sino en forma de salto (saltacionismo).

Galton ilustra el darwinismo mediante una metáfora en la que los organismos se representan como bolas de billar y la selección natural es el taco que las golpea. La redondez de las bolas denota la variación isotrópica darwiniana: los organismos solo aportan materia prima y no pueden fijar su propia dirección de cambio.
Si sustiuimos las bolas por poliedros, la dirección del avance vendrá determinada no solo por la dirección y fuerza del golpe del taco, sino también por la propia estructura del poliedro. Solo se pueden realizar ciertos canales de cambio internamente fijados.

  1. Las desviaciones que se salen de lo normal, son más importantes para la evolución que la variación de pequeña magnitud.
    • La variación continua a pequeña escala (divergencia), defendida por Darwin como causa de la mayor parte de la novedad evolutiva, no puede ser efectiva porque la regresión a la media impide la acumulación en cualquier dirección privilegiada.
    • Ninguna variación puede establecerse a menos que tenga el carácter de un salto transiliente desde una posición de estabilidad orgánica a otra.
  2. Los diferentes grados de divergencia entre formas típicas (arracimamiento: algunas formas atraen mucha diversidad de especies mientras que otras regiones del morfoespacio potencial permanecen vacías) son explicados por la jerarquía de estabilidades discontinuas en origen. Los morfotipos representan islas de estabilidad.
  3. Las posiciones de estabilidad no están esculpidas por la selección natural sino internamente prefijadas como configuraciones coherentes.

sábado, 6 de agosto de 2011

Buffon y Cuvier. Cuestionando el fijismo.

François-Hubert Drouais. Conde de Buffon.

Mientras que Linneo consideraba que las especies habían surgido en el mismo lugar y que eran inmutables, George Louis Leclerc, conde de Buffon (1707-1788), pensaba que las especies se habían originado en el lugar al que estaban adaptadas . Además, especies parecidas pero localizadas en distintos continentes o regiones geográficas deberían tener un origen común y sus variaciones eran debidas a la influencia de ambientes diferentes. Creía por tanto que las especies evolucionaban.
Otra idea básica del fijismo era que la Tierra era un planeta joven, según indicaba la cronología bíblica. Buffon, de acuerdo con sus experimentos sobre el tiempo de solidifcación y enfriamiento de esferas de hierro fundido llegó a la conclusión de que la Tierra tenía unos 75.000 años.


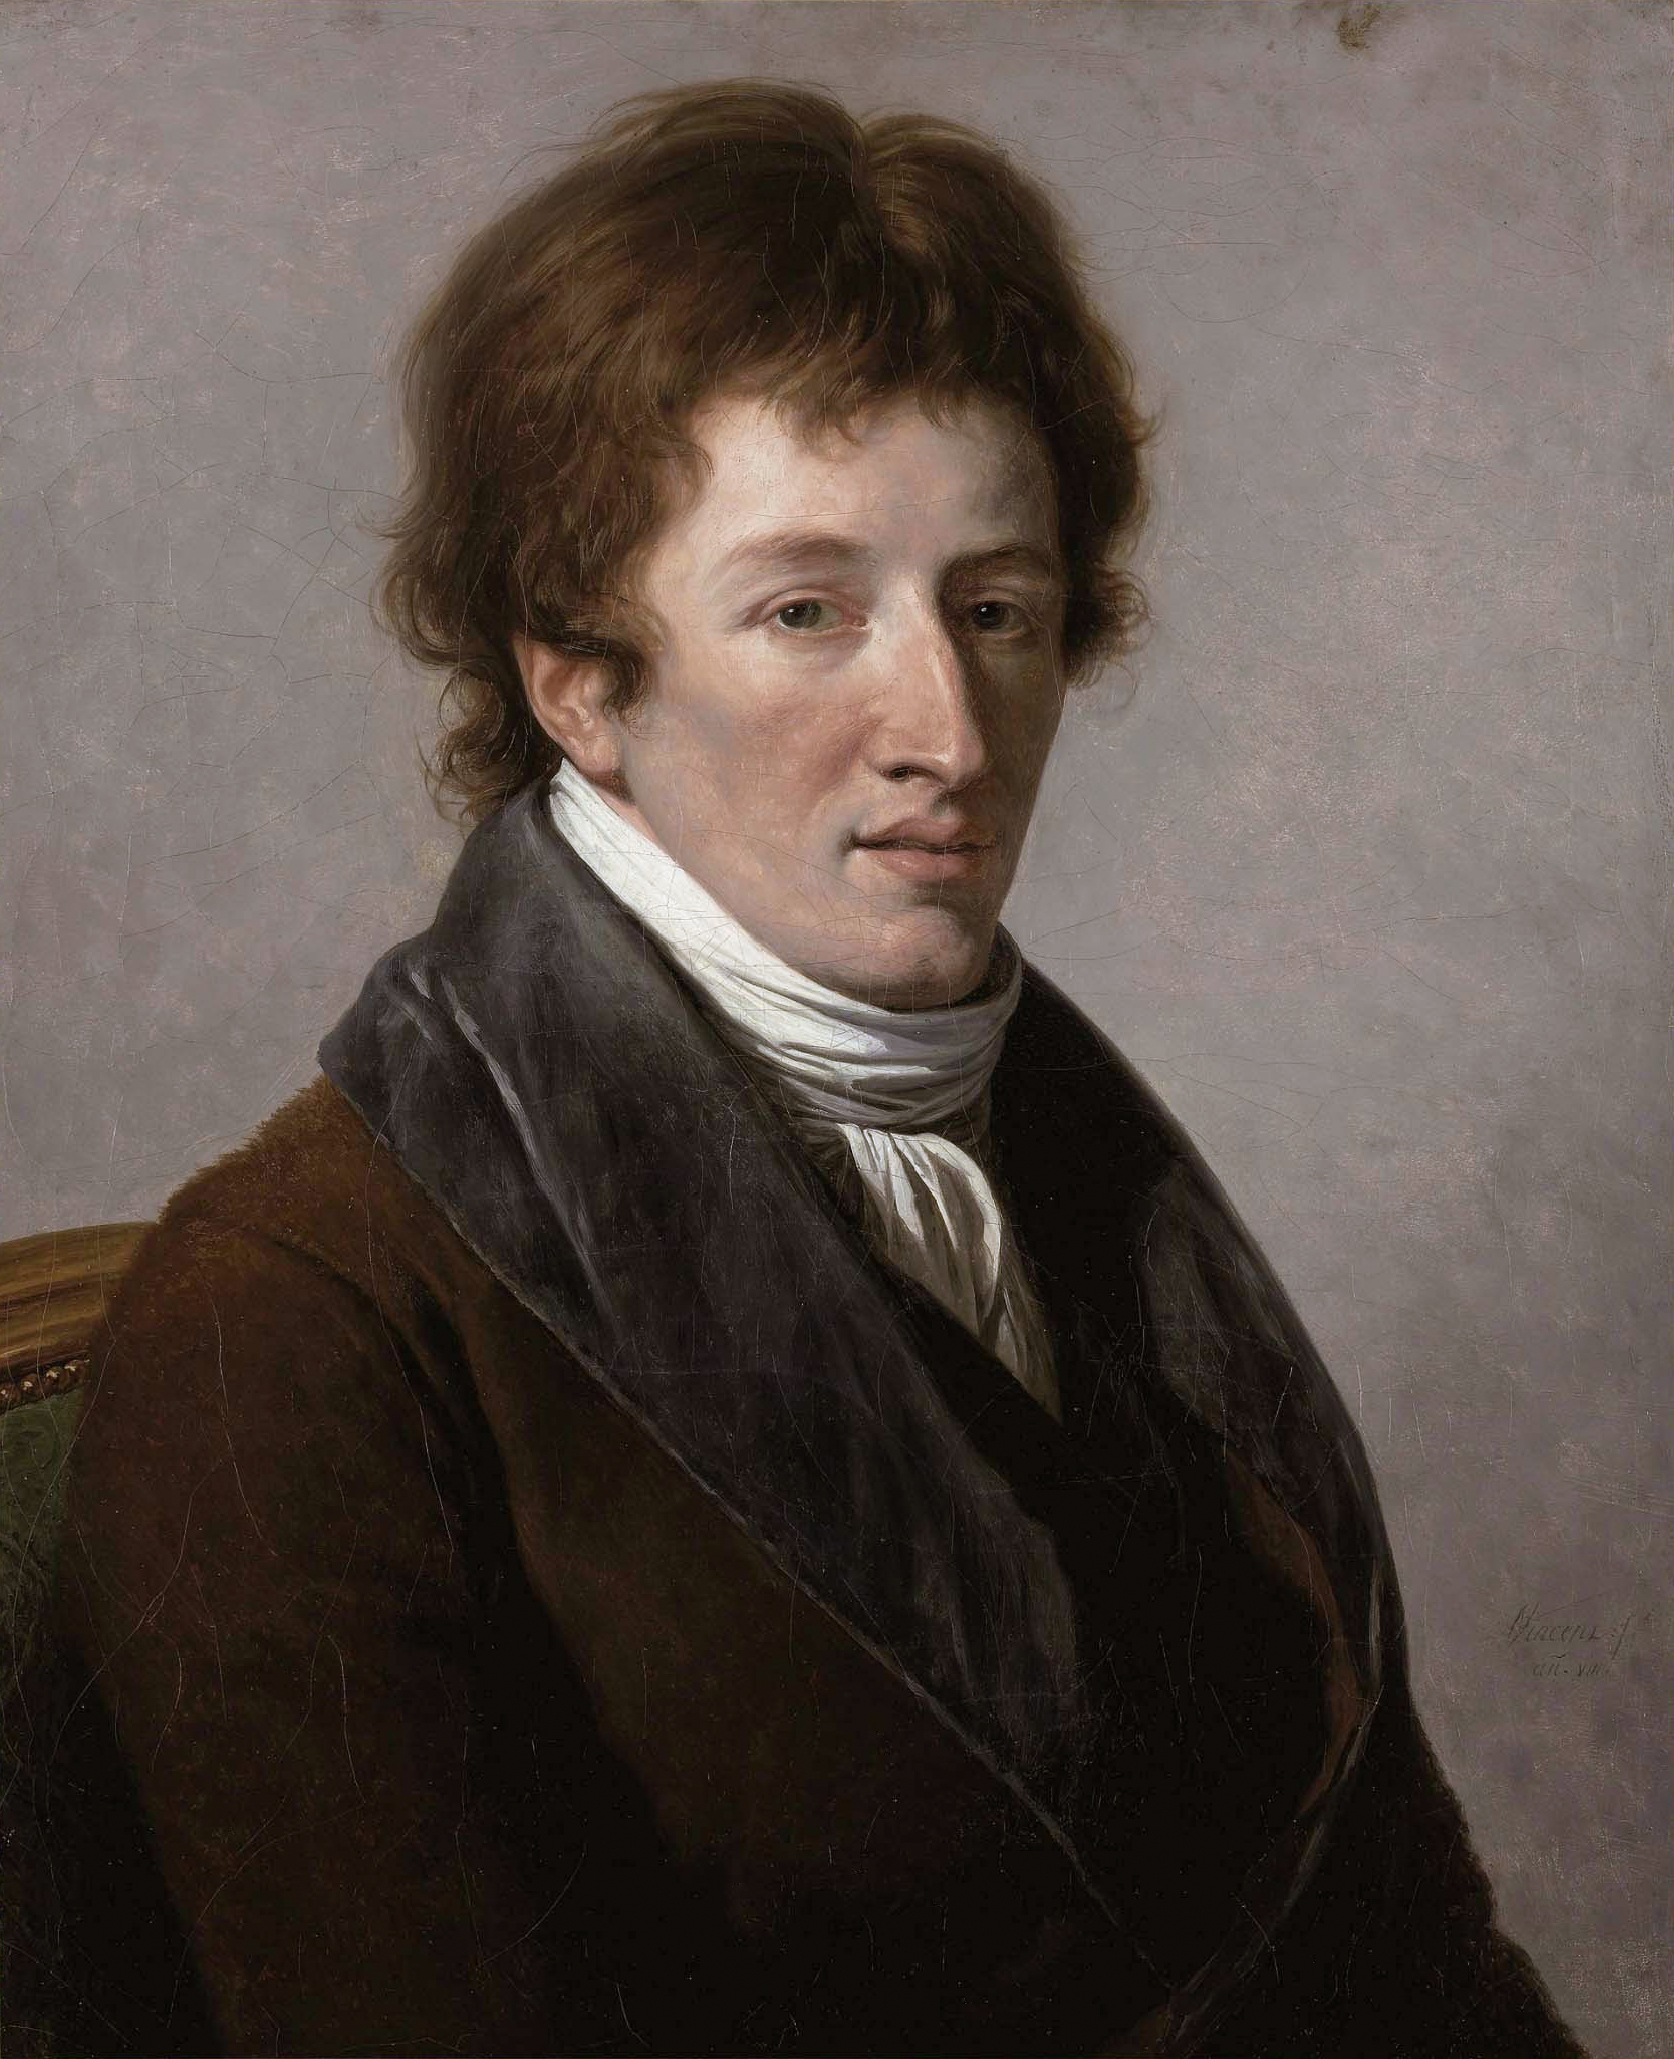
François-André Vincent. Georges Cuvier.
Georges Cuvier (1769-1832) fundó la anatomía comparada, formulando dos leyes:
  1. Ley de la correlación entre las partes. Un animal debe tener todas las partes de su cuerpo coordinadas. De acuerdo con esta ley era posible reconstruir un animal a partir de un solo hueso fósil. Por otra parte, la evolución resulta inconcebible, porque el cambio de una parte requiere el correspondiente reajuste del resto. Por ello, cuando las condiciones geológicas cambian drásticamente, se extinguen muchas especies.
  2. Ley de subordinación de los caracteres. Las partes del cuerpo más importantes para la clasificación son aquellas que están más conservadas, menos afectadas por la adaptación.
Gracias a los estudios de Cuvier con fósiles, los naturalistas se convencieron del hecho de la extinción de especies. Para Cuvier, la Tierra tenía una antigüedad de miles de siglos y el gran número de especies extinguidas indicaba que habían tenido lugar varias catástrofes. En esta secuencia de catástrofes, Cuvier veía una direccionalidad.

Cuvier cuestionó por tanto una de las bases del fijismo, la juventud de la Tierra, pero negó la evolución de las especies que propugnaba Lamark. Describió cuatro planes anatómicos: vertebrados, moluscos, artrópodos y radiados. Era imposible evolucionar de un plan a otro.

http://www.nodulo.org/ec/2011/n110p12.htm

Ver: La selva de la Teoría de la Evolución.

lunes, 25 de julio de 2011

Agassiz y el formalismo continental.

Louis Agassiz.


Louis Agassiz (1807-1873), se instaló en Harvard (Estados Unidos), tras algunos reveses empresariales y familiares sufridos en su Europa natal.
Su Essai on Classification (1857, revisado en 1859), es el polo opuesto de Natural Theology, de Paley.

Según Agassiz, las especies encarnan ideas en la mente de Dios y las relaciones entre ellas, expresadas en la clasificación, revelan la estructura del pensamiento de Dios. Por tanto, niega que las leyes naturales hayan podido modelar los organismos.

  • La clasificación refleja un orden anatómico independiente de las condiciones externas de vida (formalismo).
    • La adaptación solo es un ajuste menor de un plan que obedece a principios formalistas.
      • Los rasgos modificados por la adaptación tienen una importancia secundaria y no afectan al plan estructural.
    • Agassiz acepta los cuatro esquemas anatómicos del sistema de Cuvier y Von Baer: radiados, moluscos, articulados y vertebrados.
      • Entornos idénticos albergan criaturas de los cuatro esquemas y por otro lado en todos los ambientes principales hay criaturas de los cuatro esquemas. La repetición de tipos similares bajo las circunstancias más diversas, prueba para él la independencia de la Mente Creativa de la influencia del mundo material.
      • La historia de la vida refleja la creación sucesiva dentro de cada uno de los tipos, mientras que los agentes físicos han sido siempre los mismos en todas partes. Por ello no puede haber conexión causal entre estos agentes físicos y los seres vivos.
  • El ajuste de la forma a la función inmediata no puede representar el principio generador del orden orgánico (negación del funcionalismo).
    • La correlación entre la función y el entorno solo refleja la producción de la forma por causas físicas.
    • Son demasiadas las constricciones impuestas por la unidad de tipo que limitan cualquier aproximación orgánica a la optimalidad.

martes, 19 de julio de 2011

El altruismo recíproco.

Una idea básica de la selección natural es que los rasgos que no proveen un beneficio al portador, en términos de supervivencia y reproducción) o cuyo beneficio es menor al que proveen otros rasgos a otros individuos serán erradicados.
Sin embargo, algunos comportamientos frecuentes en animales (centinela, espulgo, limpieza de parásitos) parecen ir contra este principio: benefician, en términos de aptitud biológica, a otro individuo a expensas del que lo realiza, es decir, son altruistas.
Una explicación del altruismo se basó en la selección de grupo. La selección favorece la bondad porque beneficia al grupo.
Para David Sloan Wilson, la selección se produce en niveles múltiples. El éxito diferencial de un grupo se debe a la diferente proporción de altruistas o cooperadores. Los actos altruistas permiten que los genes se difundan de manera preferente originando diferencias de aptitud entre los grupos.
Según Robert Trivers en “La evolución del altruismo recíproco” (1971), el comportamiento altruista pudo ser un producto de la evolución si el individuo altruista recibe beneficios en reciprocidad de su comportamiento. El comportamiento altruista debe ir dirigido sólo a aquellos individuos que también son altruistas y no se aprovechan de forma egoísta del altruismo del otro, conformando así una relación de intercambios altruistas mutuos.
Para Trivers, la reciprocidad se mantendrá estable si satisface estas condiciones:
  1. Pequeños costes por dar y grandes beneficios por recibir.
  2. Un desfase en el tiempo entre la donación inicial y la recíproca.
  3. Múltiples oportunidades de interacción, haciendo que dar dependa de recibir (capacidad de recordar el apoyo dado y recibido).
Esto implica una capacidad sicológica de cuantificar los costes y beneficios de un intercambio, computar las contingencias, inhibir la tentación de defraudar y castigar a los que no jueguen limpio.
El ser humano nace con la capacidad de computar pequeños números con precisión y grandes números con aproximación. Desde la infancia, es capaz de valorar, de forma automática, si un intercambio es equitativo (Haidt).
Para Cosmides y Tooby, nuestras mentes poseen de forma innata la capacidad de detectar los defraudadores que infringen las reglas. Se trata de un sistema mental especializado, inconsciente y automático. Para probarlo, utilizaron la prueba de selección de Wason. Valerie Stone encontró que existe un sistema particular para el procesamiento de razonamientos relativos a contratos sociales. Núñez y Harris encontraron que los niños de 3 años están dotados de la capacidad de detectar defraudadores.
En El gen egoísta, Dawkins desplazó la atención de los individuos y los grupos a los genes. Según la Regla de Hamilton, un individuo incurre en un coste personal si benefía a los individuos que comparten sus genes.

La hipótesis de Trivers se vio confirmada por varios experimentos, como por ejemplo:

  • El de Robert Seyfrath y Dorothy Cheney con monos vervet (Chlorocebus o Cercopithecus aethiopios).
  • El de Frans de Waal con chimpancés.


http://www.psych.ucsb.edu/research/cep/primer.html
http://es.wikipedia.org/wiki/Tareas_de_selecci%C3%B3n_de_Wason
http://www2.psy.uq.edu.au/~stone/
http://www2.psy.uq.edu.au/~stone/StonePhilExplor2006.pdf
http://www.hegobitaldea.net/mjt/wason/la_tarea_de_wason_2004_05.htm#2.
http://www.scielo.org.ve/pdf/epi/v28n1/art02.pdf
https://netfiles.uiuc.edu/dcummins/www/HomePage/SternbergChapter.pdf
http://evolution.binghamton.edu/dswilson/
http://richarddawkins.net/
http://www.worldlingo.com/ma/enwiki/es/W._D._Hamilton
http://news.sciencemag.org/sciencenow/2011/05/even-robots-can-be-heroes.html?etoc

miércoles, 13 de julio de 2011

Teoría de la Selección Natural de Endler.

En 1986, Endler definió la selección natural como un proceso en el que deben cumplirse una serie de condiciones:
  1. Existe variación entre los individuos respecto de algún carácter.
  2. Hay una relación entre el estado del carácter y la eficacia biológica en la descendencia.
  3. La variación fenotípica es, al menos en parte, heredable.
Si estas condiciones se dan, entonces:
  • La distribución de variantes diferirá entre clases de edad más allá de lo esperado teniendo en cuenta solo la ontogenia.
  • La distribución de variantes en la generación filiar será diferente en forma predecible a la observada en la generación paterna más allá de lo esperado por la exclusiva actuación de 1. y 2.
Si solo se dan 1. y 2. pero no 3., existirá una selección fenotípica, pero no un selección natural. Esta es la diferencia esencial con el neodarwinismo, para el que la Teoría de la Selección Natural no necesita hacer referencia al origen de la variación.

lunes, 11 de julio de 2011

Modelo de la Genética de Poblaciones.

La Genética de Poblaciones surgió como una primera síntesis entre la genética mendeliana y la teoría darwinista de la selección natural.
La eficacia biológica de un genotipo se define como la contribución relativa de ese genotipo al acervo genético de la población.
  • Sea p la frecuencia genética del alelo A.
  • Se q la frecuencia genética del alelo a.
Si el apareamiento se produce de forma aleatoria,
  • El genotipo AA tendrá la frecuencia p2.
  • El genotipo Aa tendrá la frecuencia 2pq.
  • El genotipo aa tendrá la frecuencia q2.
Pero si cada genotipo tiene una eficacia biológica distinta w1, w2, w3, entonces:
  • El genotipo AA tendrá la frecuencia p2w1/w.
  • El genotipo Aa tendrá la frecuencia 2pqw2/w.
  • El genotipo aa tendrá la frecuencia q2w3/w.
  • La eficacia media de la población es w = p2w1 + 2pqw2 + q2w3.

jueves, 7 de julio de 2011

El origen de las especies.

Breve vídeo extraído del documental Darwin vs Dios, emitido por Canal Odisea.


martes, 21 de junio de 2011

Paley y el funcionalismo británico.

William Paley.

William Paley (1743-1805) publicó Natural Theology en 1802. Por aquel entonces se consideraba que todas las cosas proclamaban la existencia de Dios.
En este tratado, utilizó la famosa metáfora del relojero: si uno encuentra un reloj abandonado en el campo, su compleja configuración le llevará a concluir que ha sido diseñado con un propósito por alguna inteligencia superior. El azar no puede construir un ojo.
Usó el término adaptación para ilustrar la sabiduría de Dios en el ajuste de la forma a su función inmediata.

Paley comprendió que a su teoría podían contraponerse dos refutaciones.

  1. Las adaptaciones existen, pero las originó un porceso evolutivo natural.
    • Paley atacó los argumentos adaptativos de aquella época (el uso y el desuso) señalando que siglos de desuso no causaron la desaparición de los órganos: las mamas del macho no han desaparecido por falta de uso.
    • Además, no puede atribuirse la evolución natual a estímulos no relacionados con la forma biológica, Por ejemplo, la luz no puede crear ojos.
    • También negó las compensaciones o ajustes progresivos entre dos órganos, pues los estadios intermedios se apartarían del buen diseño.
  2. Los organismos fueron creados, pero la adaptación no domina su forma. Para los formalistas, la morfología debe surgir por razones no relacionadas con su uso. La forma viene primero y luego el organismo descubre sus usos.
    • Para Paley, este argumento no sirve para los órganos complejos: el ojo no pudo formarse sin ninguna atención a la visión.
    • Negó que las correlaciones entre las partes de los organismos surgieran por una necesidad formal o leyes de crecimiento. Existen por razones de funcionalidad común. Por ejemplo, el cuello largo, sin patas palmeadas habría sido un impedimento para el ave.
    • En cuanto a las homologías, Paley pensaba que Dios había diseñado planes generales que preveían cualquier modificación requerida para un propósito específico en las especies individuales y mostraba su grandeza al limitar su propio poder con principios de orden y diseños estructurales.

lunes, 4 de abril de 2011

Peter y Rosemary Grant. La selección natural en el Geospiza fortis.

Geospiza fortis.

Los biólogos Peter y Rosemary Grant estudiaron la selección natural en el Geospiza fortis, un pinzón terrestre mediano de la isla Dafne Mayor de las Galápagos, que se alimenta principalmente de semillas.

Capturaron, midieron, pesaron y marcaron casi todos los pinzones de la isla, durante varios años, a partir de 1973 (25 generaciones). En uno de aquellos años, la isla se vio azotada por una severa sequía. Los pinzones pronto agotaron la reserva de semillas pequeñas y blandas. Solo los pinzones con picos más altos podían consumir semillas más grandes y duras.

Entonces, los Grant comprobaron los postulados de Darwin sobre la selección natural.

  1. La reserva de alimentos fue insuficiente para alimentar a toda la población, que descendió de 1.200 pájaros a 180.
  2. Los pinzones con picos altos sobrevivieron en mayor proporción que los de picos bajos. La altura media del pico se incrementó en la población.
  3. La altura del pico constituía una característica heredable. 
  4. A los dos años, la media del pico de los descendientes de los supervivientes a la sequía fue un 4% mayor que la media del pico de la población anterior a la sequía.
Por consiguiente, la selección natural provocó en la especie una modificación morfológica adaptativa heredable. El aumento se produjo hasta equilibrar costes y beneficios, pues los pinzones con grandes picos padecen una mayor mortalidad en su juventud, debido seguramente a que necesitan más comida para crecer.

jueves, 24 de marzo de 2011

Argumento de Weismann para la omnipotencia (Allmacht) de la selección natural.

En el debate entre el evolucionismo lamarckista y el darwinista, Weismann formuló un argumento lógico a favor del darwinismo, a partir de su teoría de la continuidad del plasma germinal.

Si el lamarckismo propugnaba que la evolución era el resultado de dos fuerzas antinómicas (el progreso lineal y las adaptaciones forzadas por el ambiente) para Darwin la selección natural era la única causa de la evolución.

La teoría de la continuidad del plasma germinal establecía que los tejidos somáticos estaban aislados de los germinales y que por tanto las adaptaciones somáticas adquiridas no podían ser objeto de herencia.

En Allmacht (1893) Weismann expone un argumento lógico en favor de la omnipotencia de la selección natural (o en contra de la tesis bifactorial de Lamarck).

  1. La adaptación es ubicua en la Naturaleza. Explicar la adaptación, se convierte en la meta principal de la Teoría de la Evolución.
  2. La adaptación puede atribuirse a una causa material o a un propósito divino.
  3. Entre las propuestas materialistas, solo el lamarckismo y el darwinismo pueden explicar la adaptación.
  4. Puesto que el lamarckismo es lógicamente imposible, debido a la continuidad del plasma germinal, la adaptación debe ser la explicación correcta.
Para Weismann la selección natural es la única explicación posible para la adaptación.

Ver: http://jmflseixalbo.blogspot.com/p/teoria-de-la-evolucion.html

sábado, 12 de febrero de 2011

El método científico en Darwin. La inferencia histórica.

Los procesos pasados no pueden observarse; por lo tanto, debemos hacer inferencias sobre causas pasadas a partir de los resultados preservados.

Muchos han escrito sobre la cientificidad del darwinismo. Stephen Jay Gould fue uno de los mejores. Según él, Darwin utilizó varios métodos de inferencia histórica:
  • UNIFORMIDAD. Consiste en la extrapolación de tasas y modos de cambio en organismos modernos. Stephen Jay Gould lo llama el Principio de la lombriz pues en 1881 Darwin explicó el suelo y la topografía de Inglaterra extrapolando a millones de años el peso de las deposiciones de las lombrices en la actualidad.
    • En El origen de las especies Darwin parte del cambio histórico, las nuevas formas en plantas y animales domesticados, seleccionados artificialmente, y enlaza ésto con la selección natural.
  • SECUENCIACIÓN. Consiste en la ordenación de diversas configuraciones en etapas de un único proceso histórico, productos ordenados en el tiempo de un único proceso subyacente. Stephen Jay Goul lo llama Principio del atolón, pues en 1842 Darwin reconoció tres configuraciones de arrecife coralino (costero, en barrera y atolón) como etapas secuenciales en la formación de las islas de coral. http://es.wikipedia.org/wiki/Atol%C3%B3n
    • Una objeción planteada desde los tiempos de Darwin a este método alega que las fases intermedias no serían viables pues estaría perdida la función original mientras aún no se habría establecido la nueva.
      • Darwin argumentó que las funciones podrían ser cooptadas para otro estilo de vida. Se denominó a esta reconversión funcional preadaptación, de forma equívoca.
      • Las funciones importantes pueden correr a cargo de más de un órgano, de forma que esta redundancia puede permitir transiciones en órganos particulares.
      • Darwin presentó una serie estructural de animales distintos que mostraban la evolución gradual de una mancha ocular hasta llegar al ojo de los vertebrados.
  • CONSILIENCIA. William Whewell (1840) refirió el término a la conjunción de muchas consecuencias, aparentemente no relacionadas, bajo una única explicación causal. Stephen Jay Gould lo llamó Principio de las flores diferentes pues en 1877 Darwin reunió muchas y variadas evidencias para forjar una explicación histórica sobre las diferentes formas florales que algunos taxones muestran en la misma planta. 
    • Es el método estándar en El origen  de las especies.
  • DISCORDANCIA. Cuando no era aplicable ninguno de los métodos anteriores, Darwin buscó alguna discordancia o imperfección particular y la atribuyó a una reminiscencia o vestigio del pasado. Stephen Jay Gould lo llamó Principio de la orquídea pues Darwin, en 1862, interpretó que las adaptaciones de las orquídeas para atraer insectos no eran producto de un diseño inteligente ex profeso sino que estaban construidas con las partes disponibles de las flores ordinarias.
    • Darwin reparó en la abundancia de órganos inútiles, como los dientes del feto de la vaca o las alas plegadas bajo los élitros soldados de muchos coleópteros, y en órganos embrionarios como la respiración branquial de los embriones de aves y mamíferos.
    • Encontró también que la distribución de los seres vivos sobre la Tierra no puede explicarse del todo por el clima o las condiciones físicas, lo que atribuyó a fenómenos de dispersión ancestral.
    • Los pinzones de las Galápagos sufren unas condiciones muy diferentes a las de sus congéneres en el continente americano, por lo que tienen que ser resultado de un transporte accidental y subsiguiente cambio evolutivo.

viernes, 4 de febrero de 2011

Los paradigmas sobre la Naturaleza en tiempos de Darwin.

Desde Aristóteles, la idea de una naturaleza fija había dominado el pensamiento occidental. Pero el fijismo había sido cuestionado por Buffon (1707-1788) y Cuvier (1769-1832) entre otros.
http://jmflseixalbo.blogspot.com/2010/12/buffon-y-cuvier-cuestionando-el-fijismo.html

El evolucionismo moderno nace con Jean-Baptiste-Pierre-Antoine de Monet, caballero de Lamarck (1744-1829). Para Lamarck el clima y la geología cambian de forma lenta y uniforme y las formas y funciones de los organismos se ajustan a las características de los entornos locales (evolución adaptativa gradual).

En época de Darwin, dominaban en Iglaterra dos paradigmas que ya eran evolucionistas:
  1. El de Lamark, a través de la crítica de Lyell en sus Principles of Geology.
    • Como antes Hutton (1726-1796), Lyell (1797-1875) consideraba que la Tierra se había formado a lo largo de extensos periodos de tiempo a partir de las mismas fuerzas físicas que a diario podemos observar (uniformismo, opuesto al catastrofismo de Cuvier). Podemos resumir sus ideas en tres principios:
      • Leyes naturales (contra creación divina).
      • Lenta acción gradual (contra catastrofismo y saltacionismo)
      • Estado estacionario y azaroso de la Tierra (contra direccionalidad)
    • A pesar de esta visión de los procesos geológicos, Lyell creía en la estabilidad de las especies.
  2. El de Chambers, quien había publicado de forma anónima Vestiges of the Natural History of Creation (1844).
    • El proceso evolutivo obedece a un plan divino. Las especies de un periodo dan origen a las especies del siguiente periodo debido a procesos que modifican la reproducción. La transición entre periodos sucede muy raramente (una vez en miles de años).
Ambas teorías describían la evolución como el resultado de dos fuerzas opuestas (teorías bifactoriales):
  1. La fuerza dominante era el progreso lineal desde formas simples hasta llegar al hombre.
    • Esta idea no es científica, pues no puede refutarse.
    • Para Lamarck la fuerza complejizadora era el movimiento de los fluidos y su inevitable tendencia a excavar canales, bolsas y galerías en los tejidos blandos.
      • Sobre esta fuerza, actúa la herencia.
      • Se parte de la generación espontánea de infusorios (protistas) como criaturas acuáticas de vida libre. Estos seres unicelulares se agregaban en pólipos y afines, de los que se derivaban los gusanos simples de simetría bilateral (los gusanos sin cordones nerviosos -platelmintos acelos- son eslabones de una secuencia separada, con origen en gusanos más simples). En la parte más alta se situaban peces y reptiles; estos se bifurcaban en aves y mamíferos.
      • En contra de la idea de Cuvier de varios planes generales, Lamark aportó como prueba de un plan unitaro en los seres vivos (unidad de tipo) la presencia de dientes incipientes en los fetos de ballena, que se pierden antes de llegar a la edad adulta. Geoffroy Saint-Hilaire (1772-1824) estableció homologías entre los vertebrados y los insectos o moluscos. Von Baer (1792-1876) encontró homologías en estados embrionarios y juveniles de animales muy separados. Parecía posible que los seres actuales proviniesen de organismos ancestrales a través de modificaciones para adaptarse al ambiente.
      • Esta fuerza establece las clases y los órdenes (anagénesis).
  2. La segunda consistía en las adaptaciones forzadas por el ambiente, que provocaban desviaciones de la corriente principal.
    • Para Lamark, los cambios en el ambiente alteraban las costumbres de los seres vivos sensitivos (complejos). Estas alteraciones provocaban respuestas de los organismos que generaban cambios en el comportamiento, en el uso del cuerpo (uso y desuso) y en su morfología (con la forma siguiendo a la función, respuesta funcionalista). Los caracteres así adquiridos se heredaban mediante pangénesis (herencia de los caracteres adquiridos).
      • La variación surge con un sesgo direccional intrínseco, bien porque los organismos responden creativamente a necesidades sentidas y pasan los rasgos adquiridos directamente a sus vástagos, bien porque el entorno induce variación heredable a lo largo de trayectorias favorecidas.
      • Lamarck explicó la existencia de organismos con anatomías simples por la generación espontánea continuada. Los organismos iban ascendiendo por la escalera de la complejidad y su lugar era ocupado por formas simples (pequeñas, blandas e indiferenciadas) que se generan a partir de los constituyentes químicos.
      • Esta fuerza establece los géneros y las especies. Las especies constituyen a menudo ramificaciones laterales en torno a los grupos a los que pertenecen y sus extremos son en realidad puntos aislados (cladogénesis).
    • Para Geoffroy Saint-Hillaire el entorno imprimía los cambios directamente en los organismos.
ANTINOMIAS DE LA TEORÍA BIFACTORIAL DE LAMARCK
    Progreso linealAdaptación
    Fuerza principalDesviaciones de la corriente principal
    Orden idealPerturbación
    Anagénesis. Taxones superioresCladogénesis. Géneros y especies
    ProgresoDiversidad
    Interno o intrínsecoExterno o interactivo
    InmanenteImpredecible
    Intemporal o ahistóricoHistórico
    Profundo e invisibleSuperficial y palpable.

    Darwin descartó el progreso lineal y se fijó exclusivamente en la adaptación, a la que asignó un mecanismo: la selección natural. En línea con el uniformismo de Lyell, propuso que la selección natural, una fuerza pequeña pero constante, provocó, actuando durante millones de años, toda la diversidad biológica conocida.

    Darwin rechazó también otras ideas de su tiempo:
    • El saltacionismo, defendido por Cuvier, negaba la continuidad de las especies, y afirmaba una evolución a empujones, en línea con las catástrofes que habría sufrido la Tierra.
    • La variación inherentemente adaptativa, independiente del ambiente, defendida por Hooker.
    • La senescencia intrínseca de las especies, que consideraba que las especies, como los individuos, están destinadas a extinguirse en un tiempo más o menos determinado.

    LAS IDEAS SOBRE LA NATURALEZA EN TIEMPOS DE DARWIN
    DARWIN
    La edad y la formación de la Tierra
    Lyell: uniformismo.
    Cuvier: catastrofismo
    Paley, Agassiz: creacionismo
    Aceptó las propuestas de Lyell.
    Direccionalidad, finalidad o propósito
    Lyell: uniformismo.
    Chambers: plan divino.
    Cuvier: varios planes divinos generales.
    Lamark: un plan unitario. Sesgo direccional intrínseco.
    Paley, Agassiz: creacionismo
    Azar. La variación y la dirección del cambio evolutivo son independientes.
    Especiación
    Lyell: estabilidad de las especies.
    Chambers: procesos reproductivos modificados.
    Cuvier: saltacionismo
    Senescencia intrínseca de las especies
    Paley, Agassiz: creacionismo
    Selección natural.
    Fuerzas
    Lamark: Progreso de formas simples a complejas, con desviaciones provocadas por el uso y desuso, las consecuentes alteraciones en la forma y la herencia de los caracteres adquiridos.
    Hooker: variación inherentemente adaptativa.
    Paley, Agassiz: creacionismo
    Selección natural.

    lunes, 24 de enero de 2011

    El conflicto prenatal. La impresión genómica.

    El conflicto prenatal es un caso concreto del conflicto entre generaciones que Trivers analizó en su ponencia de 1974 El conflicto entre padres e hijos.
    http://en.wikipedia.org/wiki/Parent%E2%80%93offspring_conflict

    Según Trivers, el feto está el feto está interesado en sí mismo el doble de lo que lo está en su madre (de la que solo tiene el 50% de los genes). La madre está interesada en que el feto sobreviva y llegue a la madurez con la mínima inversión, esperando así criar más hijos, mientras que el feto está interesado en acaparar los recursos maternos, aunque esto suponga una reducción del número de sus hermanos.

    David Haig estudió la preñez de ratas con fetos manipulados genéticamente. En unos casos, los fetos eran copias al 100% de machos (padres) y en otros al 100% de las mismas madres. Según la hipótesis de Trivers, el comportamiento de los dos tipos de fetos debería ser similar. Haig comprobó, por el contrario, que los fetos 100% del padre eran más grandes.
    Se descubrieron más tarde los llamados genes imprintados (impresión genómica), que llevan una etiqueta parental. El mismo gen se comporta de manera diferente si procede del padre que si procede de la madre. En el caso del gen IGF2 (del crecimiento), solo se expresa la copia del padre. El padre y los genes del padre tienen interés en bloquear el aborto espontáneo, dirigir el flujo sanguíneo hacia la placenta, producir un feto lo más grande y fuerte posible mientras que el interés de la madre y de los genes de la madre es abortar los embriones genéticametne defectuosos, desactivar los genes del padre y gastar los recursos en función de las posibles crías a lo largo de la vida. El conflicto entre madre y feto aparece como consecuencia del conflicto entre sexos.
    http://www.oeb.harvard.edu/faculty/haig/Home.html
    http://www.oeb.harvard.edu/faculty/haig/Publications_files/08Patten%20%26%20Haig%20Genetics.pdf
    http://www.oeb.harvard.edu/faculty/haig/Publications_files/04Evidence.pdf
    http://www.oeb.harvard.edu/faculty/haig/Publications_files/03WhatGood.pdf
    http://www.oeb.harvard.edu/faculty/haig/Publications_files/03DividingChild.pdf
    http://www.oeb.harvard.edu/faculty/haig/Publications_files/93genetic%20conflicts%20in%20human%20pregnancy.pdf

    Genes imprintados. 
    http://www.babraham.ac.uk/pjl_pages/constancia/constancia.html
    Gen IGF2. 
    http://www.bio.miami.edu/dana/250/250SS10_11.html

    La diabetes gestacional surge en la mujer cuando el feto consigue bloquear, mediante la secreción de una hormona, los efectos de la insulina con lo que se produce un aumento de azúcar en sangre en el tercer trimestre del embarazo, aumento beneficioso para el feto pero peligroso para la madre.

    http://www.zoologia.hu/list/microchimerism.pdf

    lunes, 10 de enero de 2011

    Clare D'Alberto. El árbol de la vida incorporado.

    Clare D'Alberto.

    Clare D'Alberto es una estudiante de doctorado de Biología de la Universidad de Melbourne. Su pasión por la Biología ha llegado al extremo de incorporar a su cuerpo el árbol de la vida; eso sí, bastante simplificado.

    http://www.instructables.com/files/orig/F69/IP1L/GD0R0U3B/F69IP1LGD0R0U3B.pdf
    http://www.facebook.com/people/Clare-DAlberto/643071321

    Experimento de Endler para la verificación de la selección natural.

    Poecilia reticulata.

    John Endler estudió los guppies (guppy, lebistes o pez millón) salvajes (Poecilia reticulata) que viven en los riachuelos de Venezuela y Trinidad y Tobago.
    http://evolution.berkeley.edu/evosite/evo101/IVB1bInthelab.shtml

    En algunos riachuelos, los machos adultos tienen los colores del arco iris. Siguiendo las hipótesis darwinianas, Endler supuso que el atractivo colorido se debía a la selección sexual por parte de las hembras. En otros riachuelos, por el contrario, los machos son grisáceos y se mimetizan con el fondo. Endler supuso que se debía a la presión de los depredadores. La evolución encontraba un equilibrio entre los compromisos de selección de las hembras y de los depredadores.

    En laboratorio, Endler utilizó diez estanques: Cinco con fondos de grava gruesa y cinco con fondos de grava fina. Uno de ellos sin depredadores, dos con depredadores peligrosos (Crenichla alta) y dos con depredadores débiles (Rivulus hartii). Si la Hipótesis de la Selección Natural es correcta, en condiciones de depredación severa, los guppies macho se parecerán cada vez más a los fondos, mientras que si la depredación es débil, se harán más visibles para atraer a las hembras.

    Resultados.

    1. En los estanques con depredadores peligrosos, el número de manchas en los guppies macho cayó en picado.
    2. En los guppies del resto de estanques, el número de manchas fue aumentando. Maduraban a edad más tardía, eran más grandes y producían camadas con menos descendientes y de mayor tamaño.
    3. En los estanques con depredadores, las manchas imitaban el tamaño de la grava.
    4. En los estanques sin depredadores, la grava pequeña favorecía las manchas grandes y la grava grande las manchas pequeñas.